
 Среднеазиатские летно-игровые (бойные) голуби, Голуби, которых ведут, через гон |

Здравствуйте, гость ( Вход | Регистрация )
  |
 6.9.2026, 8:11
Сообщение
#15661
|
|

Группа: Пользователи Сообщений: 4239 Регистрация: 3.7.2015 Вставить ник Цитата Из: г. Чебоксары Пользователь №: 2048 Статус: Offline Репутация:  8 
 |
Цитата(Флегонтыч @ 4.9.2026, 7:21)  (отдаленное спаривание) Отдалённое спаривание это аутбридинг. Аутбридинг (от англ. out — вне и breeding — разведение) — это метод селекции, при котором скрещивают неродственных особей: они могут принадлежать к одной породе, разным породам или даже видам. Его главная задача — увеличить генетическое разнообразие потомства и объединить ценные качества, которые есть у разных родительских форм. Ключевой результат аутбридинга — повышение уровня гетерозиготности у потомства. Когда родители генетически различны, у их детей разные аллели генов, и многие из них, находясь в гетерозиготном состоянии, часто проявляют более выраженные полезные признаки. Это и есть основа эффекта гетерозиса (гибридной силы): гибриды первого поколения превосходят родителей по жизнеспособности, продуктивности, выносливости и другим важным характеристикам. Несмотря на преимущества, аутбридинг не лишён недостатков: Непредсказуемость. Результат сложно контролировать, так как сложно заранее предсказать, как именно сложатся разные генотипы родителей. Низкая наследуемость признаков. У особей, полученных в результате аутбридинга, ценные признаки могут передаваться потомству не в полной мере. Аутбридинг обычно не используют как единственный метод. Часто его сочетают с инбридингом. PS: Флегонтыч, ранее я приводил простую схему с с использованием отдалённого спаривания, но вы её с Владимировичем категорически отвергли. |
 |
 
|


|
7.9.2026, 9:18
Сообщение
#15662
|
|

Группа: Главный администратор Сообщений: 17903 Регистрация: 30.1.2012 Вставить ник Цитата Из: г.Красноярск Пользователь №: 298 Статус: Offline Репутация: 39
|
Всем привет.
Цитата(Виктор Чебоксары @ 6.9.2026, 11:11) Отдалённое спаривание это аутбридинг. Аутбридинг (от англ. out — вне и breeding — разведение) — это метод селекции, при котором скрещивают неродственных особей: они могут принадлежать к одной породе, разным породам или даже видам. Его главная задача — увеличить генетическое разнообразие потомства и объединить ценные качества, которые есть у разных родительских форм. Несмотря на преимущества, аутбридинг не лишён недостатков: Непредсказуемость. Результат сложно контролировать, так как сложно заранее предсказать, как именно сложатся разные генотипы родителей. Низкая наследуемость признаков. У особей, полученных в результате аутбридинга, ценные признаки могут передаваться потомству не в полной мере. Аутбридинг обычно не используют как единственный метод. Часто его сочетают с инбридингом. Так вот, Виктор, я как раз об этом и намекал. Еще Дарвин писал в своих работах "..скрещивание разных пород или гибридизация часто приводит к проявлению признаков дикого предка." Вот именно это, порой, мы не учитываем в свем разведение, через разнородное спаривание. Я почему к этому возвращаюсь, потому что в этом сезоне из-за не хватки материала, что бы содавать пары в чистоте, пришлось прибегать к аутбридингу. По мимо того, что снизилась (у большинства) тяга к полету, что не сомое страшное, что-то можно выбрать, плюс к этому - стало проявляться, у многих особей, дикарение в полете - как возврат к дикому признаку, что тем самым очень затруднило отбор. Поэтому шесть голов, только, порезал и то они из под чистых пар, оставил трех гибрилдных, остальных всех отдал на догонку товарищу и опять же, позавчера в покрытии одного сожрали. Да, один ушел в забой, вторая на подходе - это тоже один из недостатков этого способа разведения. Как показывает практика - это очень не эффективный метод, но иногда без него не обойтись, особенно когда сильно закровлена птица. Цитата(Виктор Чебоксары @ 6.9.2026, 11:11) PS: Флегонтыч, ранее я приводил простую схему с с использованием отдалённого спаривания, но вы её с Владимировичем категорически отвергли. Виктор, честно не помню, или не обратил внимание. Думаю схема тут простая. После разнородного спаривания - аутбридинга (гибритизации) от пары отбираются особи с близкими характеристиками к чистой породе, без забоя и без всяких дикаринных павадок, затем эта особь возвращается на голубя, или голубку в зависимости от того, кто из них по чистоте и затем уже из под этой пары отбираются лучшие экземпляры и их уже спаривают с читыми голубями в стае. Если у тебя какая-то дургуя схема - повторись, обсудим? -------------------- "Только моё мнение и оно не кому не навязывается"
|
|
|
|
|
7.9.2026, 12:24
Сообщение
#15663
|
|
|
Группа: Пользователи Сообщений: 4239 Регистрация: 3.7.2015 Вставить ник Цитата Из: г. Чебоксары Пользователь №: 2048 Статус: Offline Репутация: 8
|
Цитата(Флегонтыч @ 7.9.2026, 8:18) Так вот, Виктор, я как раз об этом и намекал. Еще Дарвин писал в своих работах "..скрещивание разных пород или гибридизация часто приводит к проявлению признаков дикого предка." Это заблуждение. Домашние голуби (и любые домашние животные) при любых вариантах скрещивания разных пород никогда не станут дикими. Во-первых, человек ведёт искусственный отбор по тем признакам которые ему нужны. Во-вторых, в процессе одомашнивания многие варианты генов дикого типа утеряны безвозвратно. В-третьих, даже если при гибридизации не вести искусственный отбор и предоставить гибридам полную свободу, настоящими дикими они не станут (см. абзац "во-вторых), они просто одичают и по причине естественного отбора будут иметь те варианты генов, которые будут способствовать выживанию (тому пример синантропные городские голуби). Ключевой результат аутбридинга это повышение уровня гетерозиготности потомков. Если простыми словами, потомки от аутбридинга будут иметь разные варианты одного и того же гена, по тем генам, по которым скрещиваемые родители отличаются. Например у одного родителя ген "А" представлен в генотипе двумя вариантами"аа", а у другого родителя этот ген представлен вариантами "АА". При скрещивании таких родителей, их потомки в своём генотипе будут иметь разные варианты гена "А", все будут гетерозиготными по этому гену - "Аа". Фишка аутбридинга в том, что в дальнейшем при скрещивании потомков первого поколении между собой или же на одного из родителей, селекционер может комбинировать с вариантами разных генов в генотипе. Например если первый родитель у нас по гену "А" имел генотип "аа", а по гену "В" - генотип "ВВ", то при скрещивании с родителем чей ген по гену "А" имеет генотип "АА", а по гену "В" - генотип "bb", мы получим потомков по гену "А" с генотипом "Аа" и по гену "В" с генотипом "Вb". Потом при скрещивании потомков первого поколения мы можем получить потомка во втором поколении с генотипом "аа ВВ", т. е. такой генотип который не был ни у одного первоначально скрещиваемых голубей. Это третий закон Менделя: 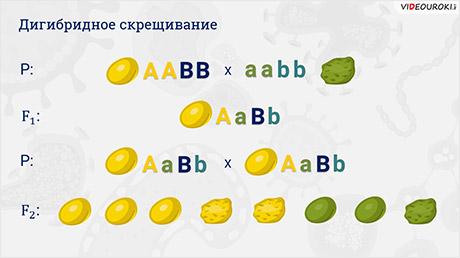 Смотри, Флегонтыч, у нас не было гороха гладкого зелёного и жёлтого морщинистого, но в результате использования аутбридинга мы их получаем. И ещё хочу тебе сказать, что от того что мы скрещиваем разные породы или отдалённых особей одной породы, гены не меняются. Другими словами, при любой гибридизации пород домашних животных, из неоткуда не появятся гены дикого типа, в потомках будут те варианты генов, которые были у их родителей. Гены меняются только в результате мутаций и больше никак. Цитата(Флегонтыч @ 7.9.2026, 8:18) что бы содавать пары в чистоте, пришлось прибегать к аутбридингу Вот тут я не понял. В чистоте, т. е. чистые это как раз про инбридинг. Только инбредные (закровленные) лини по генотипу идентичные, т. е. чистые. Когда мы скрещиваем отдалённых особей, то такая пара не может быть чистой, потому как по некоторым генам у них разные варианты в генотипе. Цитата(Флегонтыч @ 7.9.2026, 8:18) Думаю схема тут простая. После разнородного спаривания - аутбридинга (гибритизации) от пары отбираются особи Совершенно верно, схема простая, но эта схема скрещиваний особей одной породы с последующим отбором по породным качествам. Берётся выдающаяся особь и скрещивается с выдающейся особью той же породы, но отдалённой (с другого не родственного хозяйства), F1 возвращается на родителя и т. д. по схеме. Самое главное в этой схеме, то что участвуют в скрещиваниях только выдающиеся особи проверенные небом. Эта схема в себе сочетает элементы инбридинга и аутбридинга двух не родственных линий. |
|
|
|
|
8.9.2026, 8:30
Сообщение
#15664
|
|
|
Группа: Главный администратор Сообщений: 17903 Регистрация: 30.1.2012 Вставить ник Цитата Из: г.Красноярск Пользователь №: 298 Статус: Offline Репутация: 39
|
Цитата(Виктор Чебоксары @ 7.9.2026, 15:24) Это заблуждение. Домашние голуби (и любые домашние животные) при любых вариантах скрещивания разных пород никогда не станут дикими. Виктор ты опять видишь, только, свою правду, речь-то идет совершенно о другом. Вот тебе из твоего любимого ИИ, может поймешь о чем я, выделено черным. "Чарльз Дарвин действительно подробно описывал это явление, которое в биологии называют возвратом признаков или атавизмом. Что такое возврат признаков Определение: Это ситуация, когда у потомства появляются черты далеких диких предков, которых не было у родителей. Пример Дарвина: Он изучал домашних голубей и замечал, что при скрещивании разных пород у обычных пестрых птиц вдруг неожиданно проступают темные полосы на крыльях, как у дикого скалистого голубя. Почему это происходит Скрытая наследственность: Признаки диких предков никуда не исчезают, а просто маскируются поколениями селекции. Смешение генов: Скрещивание разных пород встряхивает генетический материал, и скрытые древние черты снова проявляются внешне. Закон природы: Дикий предок передал всем своим потомкам единый набор инструкций, часть из которых блокируется, пока породы чистые." Цитата(Виктор Чебоксары @ 7.9.2026, 15:24) Совершенно верно, схема простая, но эта схема скрещиваний особей одной породы с последующим отбором по породным качествам. Берётся выдающаяся особь и скрещивается с выдающейся особью той же породы, но отдалённой (с другого не родственного хозяйства). Виктор, в том-то и дело, если ты не ведешь в соем хозяйстве несколько чистых линий, то взять тебе "выдающейся особью той же породы", просто не представляется возможным, максимум найдешь середничка, в моем случае, другой породы в породе (иранец+бакинец), а когда к этому примешивается еще и атовизм (возврат признаков), только не пойми опять буквально, не дикий признак предка возвращается, а усиливается тот остаточный признак от дикового типа, который в чистом голубе притуплен и проявляется частично. Например дикарение - это когда голубь изменяет свой полет, как бы уходя от хищника (резко пикирую в сторону, вниз, переваливаясь с крыла на крыло), усиление стайного инстинкта - это когда дикарение одного голубя будет передаваться всей стаи, или круговерть - это то же одна из форм безопасноо поведения при нападении хищника, а при усилении стайного инстинкта, круговертью будут заниматься все. Да, и еще добавлю. Законы Менделя мне хорошо известны, но повторюсь, в сотый раз, они работают, только, на чистых признаках. Так что в начале нужно очиститься, только через отбор, о чем я и веду речь. Но самый лучший вариант, найти партнера с такой же породой в чистоте, на отдаленном расстоянии, и меняться с ним материалом, к сожалению то же не всегда возможно, поэтому я и рассматриваю разные варианты. -------------------- "Только моё мнение и оно не кому не навязывается"
|
|
|
|
|
8.9.2026, 8:41
Сообщение
#15665
|
|
|
Группа: Главный администратор Сообщений: 17903 Регистрация: 30.1.2012 Вставить ник Цитата Из: г.Красноярск Пользователь №: 298 Статус: Offline Репутация: 39
|
Виктор, а ты не знаешь куда у нас пропал Сергей (Владимирович), вроде вы с ним наконец-то нашли общий язык. Наверное обиделся.

-------------------- "Только моё мнение и оно не кому не навязывается"
|
|
|
|
|
8.9.2026, 9:20
Сообщение
#15666
|
|
|
Группа: Пользователи Сообщений: 4239 Регистрация: 3.7.2015 Вставить ник Цитата Из: г. Чебоксары Пользователь №: 2048 Статус: Offline Репутация: 8
|
Цитата(Флегонтыч @ 8.9.2026, 7:30) Определение: Это ситуация, когда у потомства появляются черты далеких диких предков, которых не было у родителей. Пример Дарвина: Он изучал домашних голубей и замечал, что при скрещивании разных пород у обычных пестрых птиц вдруг неожиданно проступают темные полосы на крыльях, как у дикого скалистого голубя. Флегонтыч, ты опять заблуждаешься. Вот например пример Дарвина: Он скрещивал пёстрых птиц (пегих у которых были не видны пояса). Естественно при скрещивания разных пегих, потомки будут иметь разную пегость и если в зоне поясов будут цветные перья, то элементы поясов будут видимыми. Я тут всегда вам писал, что гены у всех голубей одни и те-же, только варианты этих генов могут быть разные. А вот если бы Дарвин скрещивал между собой пёстрых голубей у которых в генотипе вместо поясного варианта были бы чеканные варианты, то никогда бы он не получил потомков с элементами поясов. Цитата(Флегонтыч @ 8.9.2026, 7:30) Скрытая наследственность: Признаки диких предков никуда не исчезают, а просто маскируются поколениями селекции. Смешение генов: Скрещивание разных пород встряхивает генетический материал, и скрытые древние черты снова проявляются внешне. Закон природы: Дикий предок передал всем своим потомкам единый набор инструкций, часть из которых блокируется, пока породы чистые." Это полная чушь типа волновой генетики и телегонии. Есть аллельное взаимодействие и не аллельное взаимодействие. Эти вещи надо правильно понимать. В том же примере Дарвина, на лицо неаллельное взаимодействие генов (эпистаз), действие одного гена "маскирует" действие другого гена. В данном случае отсутствие пигментных клеток в зоне роста перьев поясного фенотипа не может показать поясной рисунок щитка. И самое главное, этот ген щитка имеет три аллели (три варианта) поясной, чеканный и тёмночеканный. В генотип голубя вмещает только две аллели (три не могут), потому как гомологичных хромосом (одинаковых) только два, одина от отца, другая от матери. Поясной является диким типом, а остальные варианты появились в процессе одомашнивания из-за мутаций этого гена. Теперь возьмём пёстрых голубей с чеканным гомозиготным фенотипом и тёмночеканным гомозиготным фенотипом и будем скрещивать. И как бы долго мы их не скрещивали бы, мы не не получим поясных потомков. Вот и подумай, заблокирован ли поясной вариант гена или его просто там нет в генотипе. Флегонтыч, сам ген от дикого предка всегда присутствует в домашних голубях и он не может быть заблокирован по причине породной чистоты, потому-что не зависимо дикий он голубь или домашний, или это голуби разных пород, гены одни и те-же, но варианты (аллели) этих генов разные. У разных генов разное количество аллелей (вариантов), но в генотипе может быть не более двух аллелей одного гена и если селекцией какой-то аллель дикого предка не будет поддержан отбором, эта аллель исчезнет навсегда из генотипов домашних голубей. Не ген исчезает безвозвратно, а аллель (вариант) гена исчезает. PS: Флегонтыч, тебе надо научится правильно понимать генетику, тогда и многие вопросы отпадут. Дарвин вообще не знал про гены, он чисто как и ты ориентировался на видимые признаки. Потом ещё, то что везде пишут, что один ген подавляет другой ген или гены взаимодействуют и тому подобное, это не совсем правильно. Гены на прямую не могут никак взаимодействовать и подавлять друг друга, все взаимодействия происходят на уровне продуктов этих генов, а не самих генов. Вот этот текст который ты привёл как раз из этой серии: Скрытая наследственность: Признаки диких предков никуда не исчезают, а просто маскируются поколениями селекции. Смешение генов: Скрещивание разных пород встряхивает генетический материал, и скрытые древние черты снова проявляются внешне. Закон природы: Дикий предок передал всем своим потомкам единый набор инструкций, часть из которых блокируется, пока породы чистые." Тут не надо буквально понимать, что написано. Например: Скрытая наследственность. Скрытая наследственность это как раз о рецессивных вариантах гена. Если у голубя один аллель в генотипе доминантного варианта, а другая рецессивного, то фенотипический эффект рецессивного варианта гена, будет замаскирован фенотипическим эффектом доминантного варианта того же гена. Теперь, Смешение генов. Флегонтыч, гены не смешиваются между собой, они всегда чистые, просто гены могут иметь разные варианты в следствии мутаций. Под смешением тут как раз имеется ввиду, что в генотипе могут быть разные варианты одного и того же гена. Ну а это, встряхивает генетический материал, вообще из области фантастики. Текст: Дикий предок передал всем своим потомкам единый набор инструкций, часть из которых блокируется, пока породы чистые, даже не знаю как понимать. С одной стороны дикий предок действительно передал своим потомкам единый набор инструкций, т. е. единый набор генов, потому как у домашних те-же гены, что и у предка (разница только в вариантах этих генов), а вот блокировка это как-то не понятно. Блокировка сама по себе идёт, в том числе и у самого дикого предка. Например у нас молочные зубы меняются на постоянные, потом этот ген (или гены) ответственный за рост зубов блокируется и у нас не вырастают зубы третьего порядка. Японцы например разработали методику разблокировки этого гена (или генов) и теперь у взрослого человека можно вырастить новые зубы вместо утерянных. |
|
|
|
|
8.9.2026, 9:44
Сообщение
#15667
|
|
|
Группа: Пользователи Сообщений: 4239 Регистрация: 3.7.2015 Вставить ник Цитата Из: г. Чебоксары Пользователь №: 2048 Статус: Offline Репутация: 8
|
Цитата(Флегонтыч @ 8.9.2026, 7:30) Например дикарение - это когда голубь изменяет свой полет, как бы уходя от хищника (резко пикирую в сторону, вниз, переваливаясь с крыла на крыло), Это скорее всего к вопросу аэродинамике. Самолёт на малых высотах тоже стряхивает при попадание в воздушную яму. Цитата(Флегонтыч @ 8.9.2026, 7:30) Виктор, в том-то и дело, если ты не ведешь в соем хозяйстве несколько чистых линий, то взять тебе "выдающейся особью той же породы", просто не представляется возможным Тут ты меня совершенно не понял. Под "выдающимся" здесь имеется ввиду особь в твоём хозяйстве, а не гипотетическую (виртуальную). Выделяешь в своём хозяйстве самого выдающегося, а для него берёшь выдающегося из хозяйства Юринового или Пластуна, или иного хозяйства. Потом по этой схеме ведёшь селекцию. По достижении потолка порога нужных качеств, подыскиваешь более выдающегося из другого хозяйства и закладываешь новую линию по этой схеме. Цитата(Флегонтыч @ 8.9.2026, 7:30) Так что в начале нужно очиститься, только через отбор, о чем я и веду речь Создавать виртуального это топтание на месте. Цитата(Флегонтыч @ 8.9.2026, 7:30) Но самый лучший вариант, найти партнера с такой же породой в чистоте, на отдаленном расстоянии Это как раз о чём я тебе и пишу, но только не надо искать виртуального, а надо реального, желательно качеством выше твоего выдающегося илихотя бы на уровне. |
|
|
|
|
8.9.2026, 14:08
Сообщение
#15668
|
|
|
Группа: Пользователи Сообщений: 4239 Регистрация: 3.7.2015 Вставить ник Цитата Из: г. Чебоксары Пользователь №: 2048 Статус: Offline Репутация: 8
|
Цитата(Флегонтыч @ 8.9.2026, 7:30) Пример Дарвина: Он изучал домашних голубей и замечал, что при скрещивании разных пород у обычных пестрых птиц вдруг неожиданно проступают темные полосы на крыльях, как у дикого скалистого голубя. Вот решил возвратиться к примеру Дарвина. Один голубевод (имя разглашать не будем), ради эксперимента не стал разбивать пару почтовой голубки с московским монахом. Вырос птенец фото которого прилагаю: 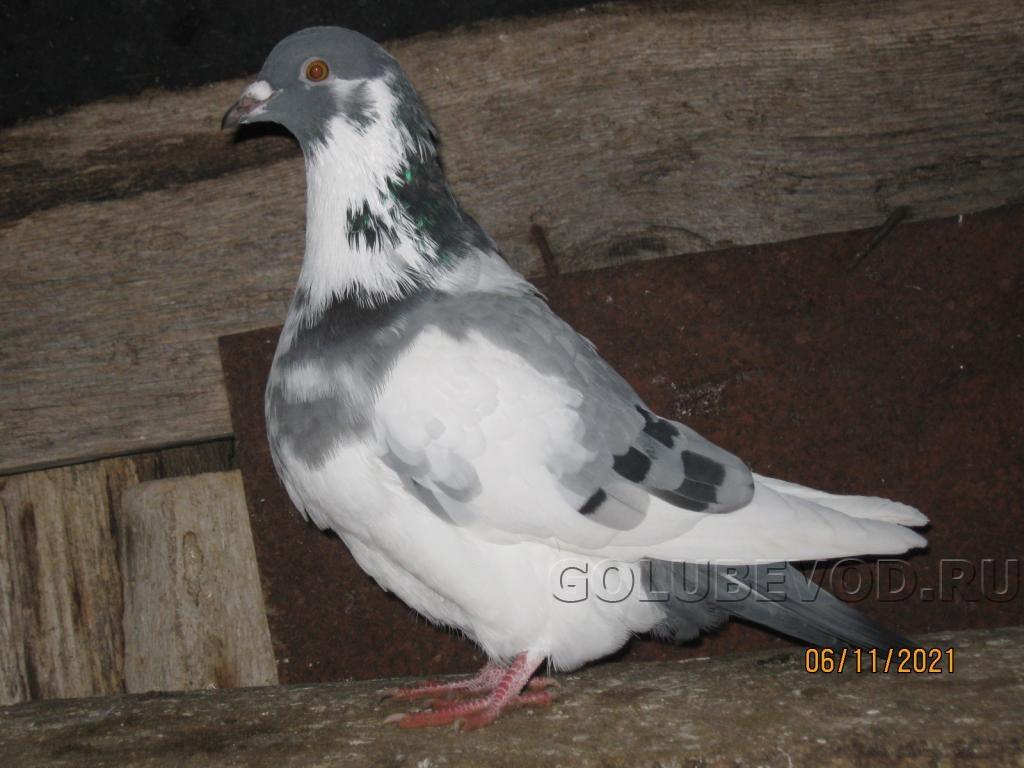 А на этом фото он с матерью: 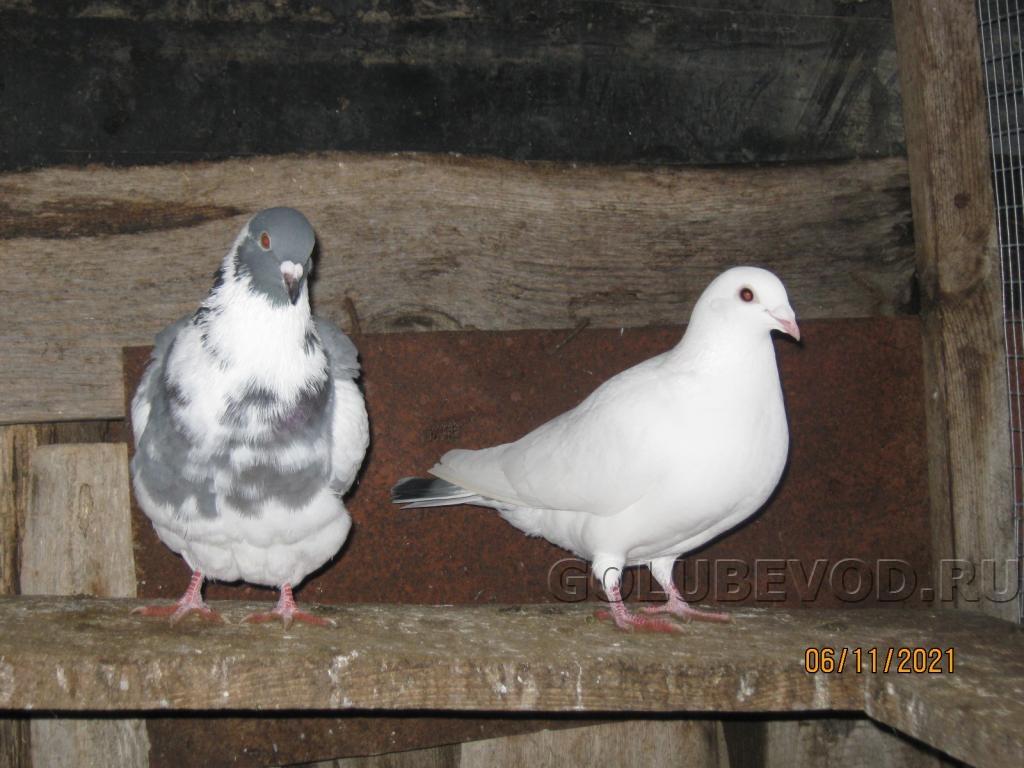 Отец был как особь справа (сизый московский монах): 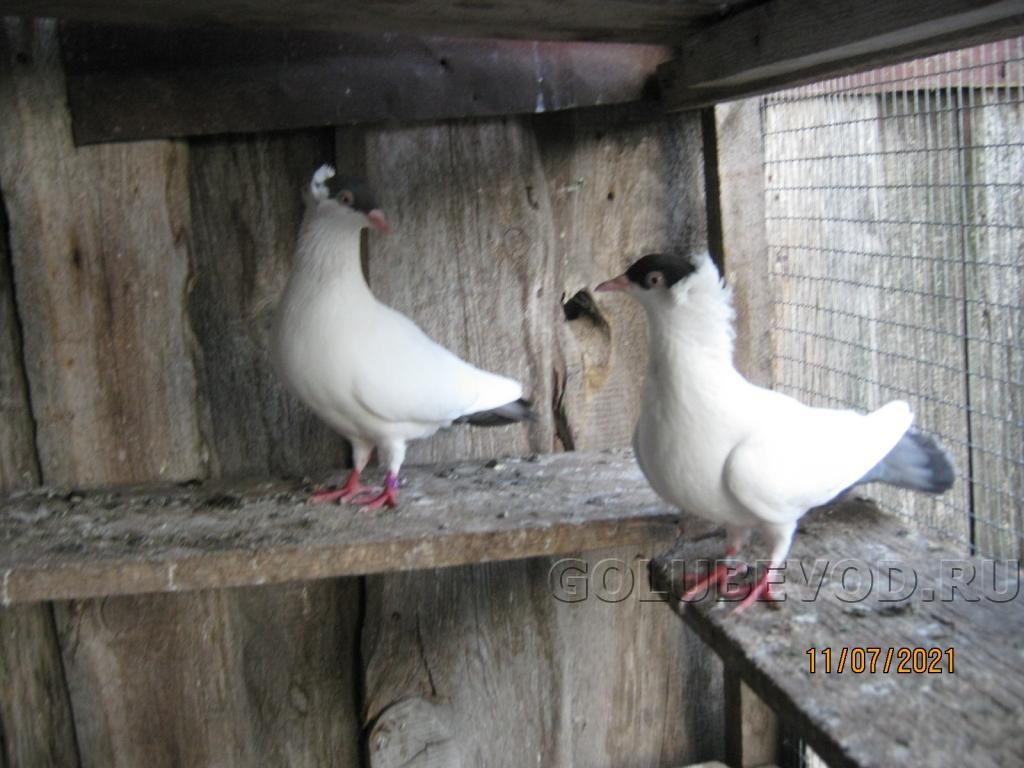 Так вот Флегонтыч, то что у птенца проступили пояса, это не возврат к предку, а просто при скрещивании разных пёстрых (пегих), у потомков из-за разной генетики пегости родителей, формируется смешанный фенотип и если в зоне поясов перья будут окрашенные, то пояса проявятся, так как ген поясатости никуда не делся и никак не был заблокирован, просто у родителей в этой зоне нет пигментных клеток и естественно не могут проявиться пояса, но сам ген у них всё равно есть в генотипе. Это говорит о том, что отец московский монах и сизохвостая почтовая голубка являются поясные голубями. Не бывает так чтоб какой-то ген отсутствовал, даже если результат этого гена не просматривается в фенотипе. |
|
|
|
|
8.9.2026, 15:31
Сообщение
#15669
|
|
|
Группа: Пользователи Сообщений: 4239 Регистрация: 3.7.2015 Вставить ник Цитата Из: г. Чебоксары Пользователь №: 2048 Статус: Offline Репутация: 8
|
Цитата(Флегонтыч @ 8.9.2026, 7:30) Чарльз Дарвин действительно подробно описывал это явление, которое в биологии называют возвратом признаков или атавизмом. Дарвин описывал не атавизм, выше сообщением я объяснил явление которое он наблюдал. Теперь атавизм. Это совсем другое, такие гены далёких предков действительно существуют и они работают на ранних этапах эмбриогенеза. Например хвост у людей. У эмбриона действительно развивается хвост, но на поздних этапах хвост редуцируется. Теперь по голубям. Хотя голуби имеют четыре пальца, но на раннем развитии эмбриона они пятипальцевые, как буквально и все животные (лошади, страусы и т. д.). Атавизм это не результат скрещивания разных пород, разных национальностей и т. д., а результат сбоя развития на раннем этапе эмбриогенеза, например появлением новых мутаций в регуляторных участках ДНК. Флегонтыч, например лохмоногость у голубей тоже можно отнести к атавизму, так как в норме гены ответственные за развитие крыльев (передних конечностей), в зачатках задних конечностей должны быть отключены, но в результате мутаций в регуляторных участках у лохмоногих голубей, эти гены частично работают, что приводит к лохмоногости. У лохмоногих голубей на ногах не только вырастают перья, но и меняется конфигурация костей. |
|
|
|
|
9.9.2026, 8:29
Сообщение
#15670
|
|
|
Группа: Главный администратор Сообщений: 17903 Регистрация: 30.1.2012 Вставить ник Цитата Из: г.Красноярск Пользователь №: 298 Статус: Offline Репутация: 39
|
Цитата(Виктор Чебоксары @ 8.9.2026, 18:31) Флегонтыч, например лохмоногость у голубей тоже можно отнести к атавизму, так как в норме гены ответственные за развитие крыльев (передних конечностей), в зачатках задних конечностей должны быть отключены, но в результате мутаций в регуляторных участках у лохмоногих голубей, эти гены частично работают, что приводит к лохмоногости. У лохмоногих голубей на ногах не только вырастают перья, но и меняется конфигурация костей. Ну вот пример по лохмоногости ты приводишь, а по всем остальнымпризнакам не допускаешь. Виктор, ты генетику воспринимаешь как панацею для всего, но в очень узком виде и отрицаешь Закон природы:-"Закон природы: Дикий предок передал всем своим потомкам единый набор инструкций, часть из которых блокируется, пока породы чистые." Я речь именно вел об этом. Пример с бабочками приводил не однократно - эта порода создана на базе вертовых голубей, верт у них притуплен, но при определенных обстоятельствах он проявляется. И по тем признакам по которым я приводил пример, они то же не куда не делись, просто они проявлялись в малой степени, но усиливаются при разнородном спаривании и не куда ты , Виктор, от этого не денешься, будешь ли ты знать генетику досканально, или поверхностно, или вовсе не соображать в ней. -------------------- "Только моё мнение и оно не кому не навязывается"
|
|
|
|
|
9.9.2026, 9:58
Сообщение
#15671
|
|
|
Группа: Пользователи Сообщений: 4239 Регистрация: 3.7.2015 Вставить ник Цитата Из: г. Чебоксары Пользователь №: 2048 Статус: Offline Репутация: 8
|
Цитата(Флегонтыч @ 9.9.2026, 7:29) Ну вот пример по лохмоногости ты приводишь, а по всем остальнымпризнакам не допускаешь. Пример лохмоногости на самом деле атавизмом не является. Это просто один из механизмов появления данного признака схожий с атавизмом, потому как передние конечности у голубей превратились в крыло, а не являются передними конечностями динозавров и естественно задние конечности не приобретают строение конечностей динозавров, а начинают превращаться в крылья голубей. 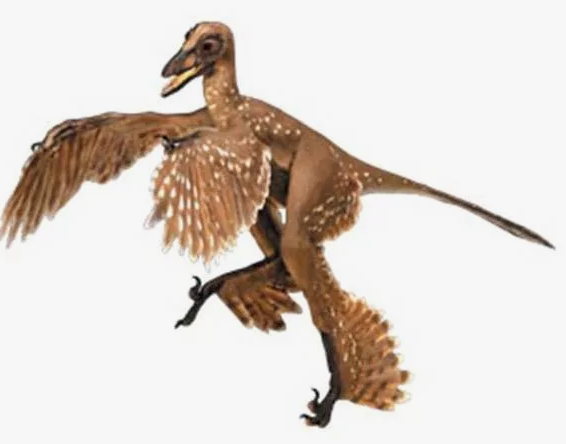 Цитата(Флегонтыч @ 9.9.2026, 7:29) Виктор, ты генетику воспринимаешь как панацею для всего, но в очень узком виде и отрицаешь Закон природы:-"Закон природы: Дикий предок передал всем своим потомкам единый набор инструкций, часть из которых блокируется, пока породы чистые." Флегонтыч, не я воспринимаю в узком виде, а ты ошибочно понимаешь. Смысл, "предок передал единый набор инструкций", в том что единый набор инструкций это единый набор генов (я неоднократно писал и пишу об этом, что у всех голубей не зависимо от пород, городской дикарь он или настоящая дикая особь, все гены у них одни и те-же). Ты не учитываешь, что гены мутируют, т. е. изменяются. При этом ген остаётся тем же, а не другим, как было у голубей 17 500 генов, так и осталось 17 500 генов. Цитата(Флегонтыч @ 9.9.2026, 7:29) по тем признакам по которым я приводил пример, они то же не куда не делись Эти признаки (поведенческие) не имеют конкретных генов ответственных за признак, за такие признаки ответственны физиологические особенности: строение крыла; особенности пера, мышц; организация нервной системы, гормональной системы и т. д., а не якобы проснувшийся от блокировки древний ген. Отката назад просто не может быть: "Генетические изменения необратимы. Мутации, дрейф генов и естественный отбор постоянно меняют генофонд популяции. Даже если признак снова становится выгодным, исходная генетическая комбинация, которая его обеспечивала, зачастую уже утрачена. Онтогенез (индивидуальное развитие) эволюционирует. Путь формирования организма меняется, и восстановить точную программу развития предков нереально. Например, даже если у потомка появится «предковый» признак, он скорее всего будет реализован через другие механизмы развития". Как видишь даже слово предковый, взят в кавычки, потому как это может быть похожим, но не предковым и механизм появления его будет другим, а не проснувшегося от блокировки древнего гена. В частности "по тем признакам по которым ты приводил пример". Сам посуди, твои голуби и например Юринова, например по генам строение крыла; особенности пера, мышц; организация нервной системы, гормональной системы и т. д., они одинаковые, но разные по вариантам этих генов в некоторых позициях. Например у твоих по гену "А" с генотипом "Аа", а у него с генотипом "АА" или "аа". Вот такая разница вариантов генов при гибридном скрещивании даёт разнообразные генотипы. И это естественно. В дикой природе дрейв генов (а это и есть дрейв генов), отбор подхватит тот вариант сочетаний, который оставит после себя наибольшее число потомков, но в отличии от естественного отбора, мы сознательно ведём искусственный отбор. А ты сразу заметил какие-то отклонения и "опустил руки", забывая что первое поколение это не показатель в селекции, это рабочий материал с богатой комбинацией вариантов генов. И если грамотно вести селекцию, то ты "отчищаешь" от ненужного, оставляя нужное, потому как всех потенциальных кандидатов пускаемых в разведение, проверяешь небом (рабочие характеристики). Грамотная селекция это не качание туда-сюда методом тыка, а систематизированная, последовательная работа, что как раз и отражается в схемах скрещиваний. Вот давай ещё раз проанализируем приведённую ранее мной схему: 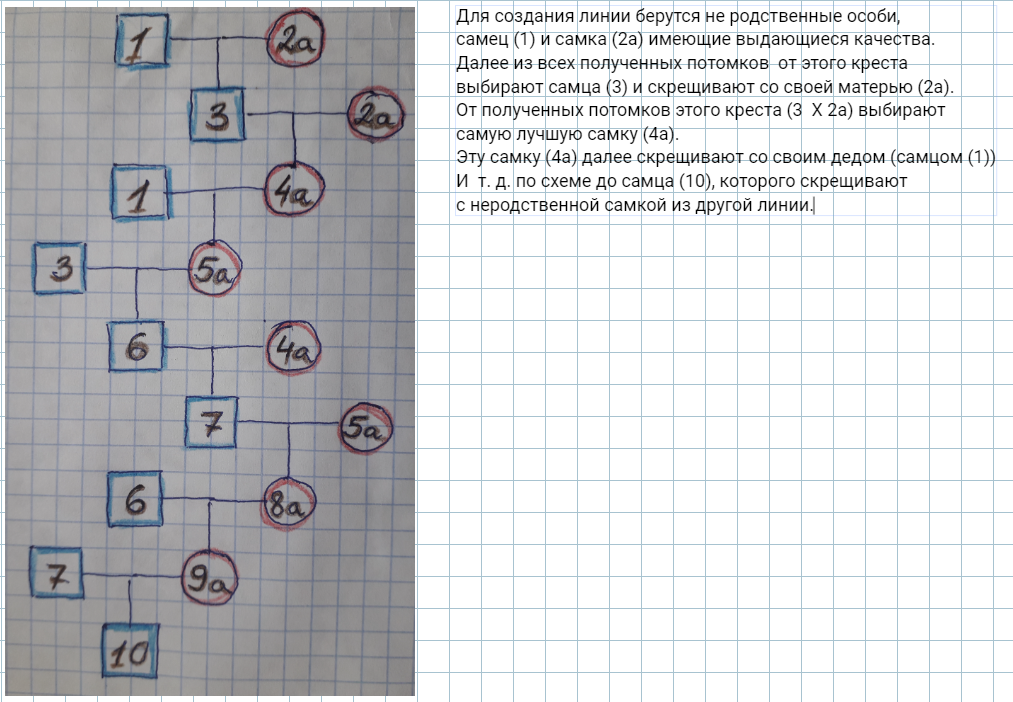 Давай рассмотрим пример, что ты взял своего выдающегося и выдающуюся Юринова. Суть этой схемы в том, что ты всё время возвращаешься, то к генотипу своего родоначальника, то к генотипу родоначальницы Юринова, т. е. то увеличиваешь присутствие вариантов генов своей линии, то увеличиваешь варианты генов линии Юринова. А так как все кандидаты для скрещиваний проверяются по рабочим качествам, и генотип голубей содержит два варианта любого гена, ты по ходу селекции отсеиваешь не нужные варианты, оставляя нужные. |
|
|
|
|
11.9.2026, 9:05
Сообщение
#15672
|
|
|
Группа: Пользователи Сообщений: 4239 Регистрация: 3.7.2015 Вставить ник Цитата Из: г. Чебоксары Пользователь №: 2048 Статус: Offline Репутация: 8
|
Цитата(Флегонтыч @ 9.9.2026, 7:29) блокируется, пока породы чистые." Флегонтыч, а ты задайся вопросом, как и на основании чего генотип реагирует (узнаёт), что порода стала не чистой, чтоб разблокировать заблокированное  Вот например у тебя у голубя нет в фенотипе дикаринных признаков и у другого голубевода у голубей нет в фенотипе дикаринных признаков. Ты их скрещиваешь и откуда, из-за чего вдруг у их потомков появляется дикаринный признак, за счёт чего вдруг "заблокированный" древний ген "просыпается". И почему именно ген дикаря просыпается, а не ген динозавра или ещё более отдалённого предка? Ведь тот же дикарь произошёл от динозавра и тоже по твоей логике имеет заблокированные гены динозавра, которые по закону природы динозавр передал единый набор инструкций, а в свою очередь динозавр унаследовал от своего предка тоже единую инструкцию от более отдалённого предка. Теперь поконкретнее. ИИ был задан вопрос: Могут ли появится признаки волка при скрещивании отдалённых по родству собак? Ответ: Короткий ответ: нет, не появятся. Я поясню, в чём тут дело, чтобы развеять распространённое заблуждение. Собаки — это одомашненная форма волка (Canis lupus). То есть генетически они очень близки: у них общий предок, и в геноме любой современной собаки уже «зашиты» волчьи гены — просто в разной пропорции. Поэтому, когда вы скрещиваете две разные, но всё же собачьи породы (даже если они сильно отличаются внешне — скажем, чихуахуа и алабая), вы не добавляете в смесь «чистую» волчью ДНК. Вы просто комбинируете уже имеющиеся в собачьем генофонде варианты генов. И потому «новых» волчьих признаков (которых не было ни у одного из родителей) из ниоткуда взяться не может. Иногда люди замечают у помеси какие-то черты, напоминающие волка (вытянутая морда, стоячие уши, определённый окрас), но это не потому, что «проснулся» скрытый волчий ген. Скорее, у одной из родительских пород эти черты выражены ярко, и они просто проявились у потомства. Или же случайно совпали разные собачьи гены, дав комбинацию, которая человеку визуально кажется «волчьей». Тут ключевой момент: настоящие «волчьи» признаки (в том смысле, о котором вы спрашиваете) действительно можно увидеть, но только если в скрещивании участвует сам дикий волк, а не две собаки, пусть даже очень разные. Именно так появились породы вроде чехословацкого влчака или волчьей собаки Сарлоса. В их родословной есть прямой вклад волчьей ДНК, поэтому у них и внешность, и иногда поведенческие черты действительно имеют выраженный «волчий» оттенок. Иногда обсуждают и поведенческие «волчьи» признаки (например, склонность к вою, повышенную настороженность). И здесь тоже работает принцип: если в роду были собаки с относительно большим «волчьим наследием» (древние породы), у их потомства такие черты могут проявляться ярче. Но это опять же не появление нового признака из-за скрещивания двух отдалённых собак, а проявление уже имевшихся в генофонде вариантов. Так что резюмирую: скрещивание двух собак, какими бы разными они ни были, не приведёт к появлению истинно волчьих признаков — для этого нужен прямой вклад гена дикого волка. |
|
|
|
|
11.9.2026, 10:31
Сообщение
#15673
|
|
|
Группа: Пользователи Сообщений: 4239 Регистрация: 3.7.2015 Вставить ник Цитата Из: г. Чебоксары Пользователь №: 2048 Статус: Offline Репутация: 8
|
Цитата(Флегонтыч @ 9.9.2026, 7:29) Виктор, ты генетику воспринимаешь как панацею для всего, но в очень узком виде и отрицаешь Закон природы Флегонтыч, законы живой природы базируются на генетике. Давай я тебе объясню, почему хвост как атавизм остался в нашем генотипе. Флегонтыч, если не вдаваться в подробности, то гены можно разделить на два типа: консервативные и быстро эволюционирующие. Ген развития хвоста является консервативным геном, т. е. любая мутация изменяющая её функцию приводит к летальности. Этот ген очень важен для развития эмбриона. Он есть у всех животных (от рыб до человека). Он нужен для формирования мезодермы, закладки оси тела и развития нотохорда — базовых структур, общих для всех хордовых. Строго говоря, не бывает «спящих генов», "заблокированных" генов, которые потом вдруг внезапно «просыпаются», а есть консервативные гены, которые нужны, они часто управляют базовыми процессами (развитие, деление клеток и т. п.), но их активность часто строго контролируется. Образование и "рост" пальцев например - это как раз работа консервативных генов: "Многие думают, что пальцы просто постепенно удлиняются, но на деле процесс интереснее: сначала формируется общая «заготовка», а потом из неё как бы «вылепливаются» отдельные пальцы. Появление зачатка. Примерно на 4-й неделе эмбриогенеза по бокам тела возникают небольшие выступы — зачатки конечностей. Сначала формируются зачатки рук, чуть позже — ног. Формирование «ласты». На следующих стадиях (примерно к 6-й неделе) зачаток кисти или стопы выглядит как сплошная пластинка. В ней уже заложен паттерн: зоны, где будут пальцы, и промежутки между ними. «Вырубка» пальцев. Ключевой момент: пальцы не растут из основания наружу. Происходит апоптоз — запрограммированная клеточная смерть. Клетки в промежутках между будущими пальцами деактивируются и отмирают, и так из сплошной массы чётко выделяются отдельные пальцы. Именно поэтому иногда говорят, что пальцы «вырубаются», как скульптура из мрамора. Дифференцировка. После того как очертания пальцев стали явными, в соответствующих зонах начинается формирование хрящевых зачатков будущих костей (фаланг). Позже в этих закладках появляются очаги окостенения. Также в этот период развиваются мышцы, нервы, кровеносные сосуды. Дополнительные детали. На более поздних стадиях (примерно с 9–10 недель) в области дистальных (концевых) фаланг начинают формироваться пальцевые подушечки. Позже на них закладывается уникальный папиллярный узор (отпечатки пальцев). А что управляет этим процессом? За точную «программу» отвечают сложные взаимодействия молекул и генов. Учёные описывают это с помощью модели Тьюринга (реакционно-диффузионный механизм). В её основе — взаимодействие веществ-морфогенов, которые создают в ткани узор. В формировании пальцев участвуют, например: Bmp — активирует транскрипционный фактор Sox9 в зонах, где сформируются хрящевые зачатки пальцев. Wnt — подавляет активность Sox9 в промежутках между будущими пальцами. FGF (фактор роста фибробластов) — концентрируется на кончиках будущих пальцев и помогает «раздвинуть» зоны активности других морфогенов, из-за чего пальцы не растут параллельно, а немного расходятся. Hox-гены (например, Hoxd13) — тоже играют роль: если их «отключить», число пальцев может измениться. Если на каком-то из этапов происходит сбой в этой тонкой настройке, это может привести к аномалиям — например, к появлению лишних пальцев или их сращению. Получается, формирование пальцев — это слаженная работа генетической программы, клеточных процессов и биохимических сигналов". 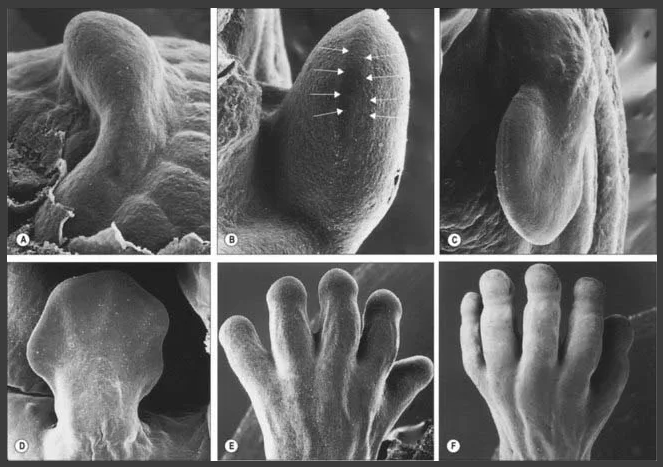 Как видишь, Флегонтыч, за формирование пальцев отвечают древние гены унаследованные от рыб, пальцы не растут, а вырубаются из пластинки (лепёшки, "плавника"). Так что древние гены "заблокированные пока породы чистые" это гены развития организма в эмбриональный период, а не дикариного поведения и тому подобное. |
|
|
|
|
Сегодня, 8:14
Сообщение
#15674
|
|
|
Группа: Главный администратор Сообщений: 17903 Регистрация: 30.1.2012 Вставить ник Цитата Из: г.Красноярск Пользователь №: 298 Статус: Offline Репутация: 39
|
Цитата(Виктор Чебоксары @ 9.9.2026, 12:58) А ты сразу заметил какие-то отклонения и "опустил руки", забывая что первое поколение это не показатель в селекции, это рабочий материал с богатой комбинацией вариантов генов. И если грамотно вести селекцию, то ты "отчищаешь" от ненужного, оставляя нужное, потому как всех потенциальных кандидатов пускаемых в разведение, проверяешь небом (рабочие характеристики). Грамотная селекция это не качание туда-сюда методом тыка, а систематизированная, последовательная работа, что как раз и отражается в схемах скрещиваний. Вот давай ещё раз проанализируем приведённую ранее мной схему: Давай рассмотрим пример, что ты взял своего выдающегося и выдающуюся Юринова. Суть этой схемы в том, что ты всё время возвращаешься, то к генотипу своего родоначальника, то к генотипу родоначальницы Юринова, т. е. то увеличиваешь присутствие вариантов генов своей линии, то увеличиваешь варианты генов линии Юринова. А так как все кандидаты для скрещиваний проверяются по рабочим качествам, и генотип голубей содержит два варианта любого гена, ты по ходу селекции отсеиваешь не нужные варианты, оставляя нужные. Виктор, я не опустил руки, а привел конкретные факты того, что разнородное спаривание одного чистого голубя по признакам с неизвестным тебе, но, вроде как со слов , хорошего, не приведет к хорошему результату не при каких схемах, кроме той, что требует длительной работы, не имеющей под собой смысла. Вот про этоя говорил. Теперь ты о чем говоришь "ты взял своего выдающегося и выдающуюся", тут и дураку понятно, что по основным признакам ЛИ ты получишь хорошее потомство, главное что бы эти "выдающиеся", были в чистоте, но вот не всегда тебе достанется "выдающийся" в чистоте, вот тогда и применима втоя схема, которую я то же описал выше словами. Я писал о том, что тебе, как бы, дают на вывода хорошего голубя, но он принадлежит к другой породе, или очень отдаленной крови, возможно выдающегося, но не чистого, и при паровке, таких голубей признаки усилиываются по всем направлениям, не только по ЛИ, а в том числе и те которые влияют на такие инстинкты как самосохранение, половой инстинкт и т.д., которые в свою очередь изменяют поведение голубя в полете, а вот что бы от этого очистится, как ты пишешь выше - это поведенчиские признаки, уже не так то просто. Отсюда и мой вывод, надо не мудрить , а работать с читыми голубями одной породы и уже по ним применять твою схему. -------------------- "Только моё мнение и оно не кому не навязывается"
|
|
|
|
|
Сегодня, 8:22
Сообщение
#15675
|
|
|
Группа: Пользователи Сообщений: 4239 Регистрация: 3.7.2015 Вставить ник Цитата Из: г. Чебоксары Пользователь №: 2048 Статус: Offline Репутация: 8
|
Из всего выше написанного напрашивается вопрос:
повторяет ли эмбриогенез этапы эволюции у разных животных и до какого момента он имеет сходство у разных видов животных и человека? потому-что каждый раз когда ты объясняешь этапы формирования игры, сравниваешь с этапами эмбриогенеза. И вот получаем такой развёрнутый ответ: "Вопрос отличный! В нём кроется одна из самых интересных тем на стыке эмбриологии и эволюции. Я бы сказала так: частично повторяет, но не в том смысле, как часто представляют в популярных мифах. Давайте разберу подробнее. Повторяет ли эмбриогенез этапы эволюции? Идея, что эмбрион «прокручивает» этапы эволюции предков, восходит к биогенетическому закону Геккеля — Мюллера. Его формулировка: онтогенез (индивидуальное развитие) — это краткое и сжатое повторение филогенеза (исторического развития вида). То есть в эмбриогенезе якобы последовательно воспроизводятся целые стадии, которые прошли предки. Но современная наука эту идею не принимает в чистом виде. Почему? Дело в том, что в ходе эволюции на эмбриональные стадии часто «накладываются» новые приспособления (их называют ценогенезами) — например, специальные структуры для развития в утробе или в яйце. Эти новшества искажают «чистую» картину, и полное повторение всех этапов становится невозможным. Более того, учёные выяснили: эмбрионы повторяют не взрослые формы предков, а их эмбриональные стадии. При этом отдельные элементы действительно прослеживаются. Например, у эмбрионов всех позвоночных (включая человека) на определённом этапе закладываются жаберные дуги (точнее, фарингеальные складки). У рыб из них развиваются жабры, а у человека — структуры челюстей, слуховые косточки, части гортани и другие органы. Это не «прохождение стадии рыбы», а сохранение древнего генетического механизма, который в разных ветвях эволюции дал разные результаты. До какого момента сохраняется сходство? Здесь работает другой принцип — закон зародышевого сходства Карла Бэра. Бэр заметил: чем более ранние стадии эмбрионального развития мы сравниваем у разных видов, тем больше сходства обнаруживаем. Сначала проявляются общие признаки крупной группы (например, типа хордовых), затем — более частные (класса, отряда, семейства), и только в самом конце — специфические черты вида и индивидуальные особенности. То есть сходство максимально на ранних стадиях. А по мере развития эмбрионы всё сильнее расходятся — начинают формироваться признаки, характерные именно для их группы. В эмбриологии даже есть понятие филотипической стадии — это особый период (часто примерно в середине развития), когда эмбрионы в пределах одного типа демонстрируют наивысшую степень морфологического и молекулярного сходства. После неё начинается активная дивергенция. Итог Эмбриогенез не является точной «кинолентой» эволюции — он не повторяет все этапы подряд и в неизменном виде. Но в нём действительно сохраняются отдельные «эхо» общего эволюционного прошлого — консервативные генетические программы, которые работали у далёких предков. Сходство наиболее выражено на ранних стадиях и достигает пика на филотипической стадии, а затем постепенно сходит на нет по мере специализации. Так что эмбриогенез скорее отражает общее эволюционное наследие и консервативность некоторых базовых процессов развития, а не буквальное повторение эволюционных этапов. |
|
|
|
|
Сегодня, 8:37
Сообщение
#15676
|
|
|
Группа: Пользователи Сообщений: 4239 Регистрация: 3.7.2015 Вставить ник Цитата Из: г. Чебоксары Пользователь №: 2048 Статус: Offline Репутация: 8
|
Цитата(Флегонтыч @ 14.9.2026, 7:14) Отсюда и мой вывод, надо не мудрить , а работать с читыми голубями одной породы и уже по ним применять твою схему. Флегонтыч, допустим ты довёл своих голубей до чистого (это достигается при инбридинге), теперь у тебя по нужным генам голуби гомозиготные, т. е. например по гену "А" имеют генотип "АА", по гену "В" - генотип "bb" и т. д. по другим генам. Но эта чистая линия будет подвержена инбредной депрессии, будут слабыми по здоровью, плодовитости и т. п. А чтоб избежать инбредной депрессии, тебе придётся прибегнуть к кресту с не родственной птицей. В итоге вся работа по достижению чистоты может пойти "коту под хвост", так как не родственный голубь мог иметь по гену"А" - генотип "аа", по гену "В" - генотип "ВВ" и т. д. по другим генам, т. е. ты опять в таких случаях придёшь к тому, с чего начинал. Так не лучше ли сразу вести работу по двум не родственным голубям, не делая их инбредными, используя сразу умеренный аутбридинг и инбридинг. Ты же сам недавно тут писал, что надо брать голубя не родственного, чтоб улучшить показатели и мол так поступает Юринов. |
|
|
|
|
Сегодня, 8:58
Сообщение
#15677
|
|
|
Группа: Пользователи Сообщений: 4239 Регистрация: 3.7.2015 Вставить ник Цитата Из: г. Чебоксары Пользователь №: 2048 Статус: Offline Репутация: 8
|
Теперь закрывая вопрос о "заблокированный генах" выстреливающих при не родственных спариваниях, хочу поделиться интересной информацией, что я откопал.
Оказыватся у всех птиц сохранились гены зубов: "Дело в том, что в геноме птиц эти «зубные» гены сохранились. У общего предка птиц и других архозавров (например, крокодилов) зубы были, и гены, регулирующие их развитие (вроде Shh, Bmp4, Fgf8, talpid2), работали. В ходе эволюции птицы утратили зубы, но сами гены не исчезли — просто в норме у эмбрионов птиц их активность в нужное время и в нужном месте подавлена. И вот в чём связь с другими признаками. На ранних стадиях эмбриогенеза разные зачатки (будущие зубы, челюсти, кожа) активно взаимодействуют — это называется эмбриональной индукцией. Одна ткань посылает сигналы другой, направляя её развитие. Когда в ходе эволюции у птиц «выключили» зубную программу, перестроились и сигнальные пути в этой области. И эти же перестроенные сигналы (например, особый паттерн экспрессии тех же Bmp или Fgf) теперь влияют на формирование других структур — в первую очередь клюва. То есть гены, которые когда-то работали на зубы, в изменённом контексте участвуют в закладке совершенно иной структуры. Это хорошо видно в экспериментах. Например, у цыплят с мутацией в гене talpid2 на определённом этапе на дёснах появляются конические выросты, похожие на зачатки зубов аллигатора. А если искусственно активировать в эмбрионе другие гены (например, β-catenin), можно добиться похожего эффекта — формирования таких выростов. Это показывает: молекулярный «язык» сигналов, который когда-то запускал зубы, в определённых условиях может быть перенаправлен на другие задачи. При этом важно не путать: гены зубов не «решают», какой будет форма клюва или как вырастут перья — за это отвечают свои регуляторные сети. Но «строительный материал» и некоторые базовые сигнальные молекулы, которые когда-то были задействованы в одном процессе, в ходе эволюции стали частью программы для другого. Получается, гены зубов у птиц на ранней стадии эмбриогенеза не формируют другие признаки напрямую, но их остаточная активность и перестройка связанных с ними сигнальных путей косвенно влияют на то, как развиваются соседние структуры. Ген talpid2 — это ген у птиц (в первую очередь его изучали на куриных эмбрионах), мутация в котором приводит к ряду аномалий развития и, в частности, способна «пробуждать» древние программы формирования зубов. Что известно о гене Функция в норме. Talpid2 — важный регулятор эмбрионального развития: он участвует в сигнальных путях, которые контролируют формирование скелета, перьев, органов и паттернов тканей. Это не «ген зубов» как таковой, а ген, влияющий на развитие, при нарушении работы которого снимаются блокировки с древних морфогенетических программ". Есть ли ген talpid2 у человека? Ответ: "Да, у человека есть ген, гомологичный куриному talpid2 — это ген C2CD3. В чём разница в названиях Talpid2 — принятое в исследованиях на птицах (в первую очередь на курах) название мутантного фенотипа и соответствующего гена. У человека и других млекопитающих этот ген обозначают как C2CD3 (coiled-coil domain containing 3). Что делает этот ген C2CD3 критически важен для формирования первичных ресничек — небольших клеточных структур, которые работают как «антенны» и участвуют в передаче ключевых сигнальных путей (в том числе пути Sonic Hedgehog, SHH), управляющих развитием эмбриона. Из‑за этой роли мутации в C2CD3 у человека связаны с тяжёлыми нарушениями развития и входят в спектр цилиопатий (заболеваний из‑за дефектных ресничек), например с синдромом Жубера и другими синдромами с неврологическими и скелетными аномалиями. Учитывая ваши прошлые вопросы про атавизмы, гены и эмбриональное развитие: роль C2CD3/talpid2 как раз в том, что он не «возвращает» древние признаки, а обеспечивает правильную работу базовых механизмов эмбриогенеза — и если он ломается, развитие идёт не по пути «проявления атавизмов», а по пути грубых пороков". |
|
|
|
|
1 чел. читают эту тему (гостей: 1, скрытых пользователей: 0)
Пользователей: 0
| Текстовая версия | Сейчас: 14.9.2026, 14:09 |